|
Etude de l’effet paternel et de l’effet maternel sur la productivité de deux variétés de maïs (zea mays l.): maïs blanc et maïs jaune cultivés en Côte d’Ivoirepar Badié Arnaud Kouago Université Nangui Abrogoua - Maitrise 2016 |
ABSTRACTThe comparative study of the effects of pollen sources and the effects of plants on garin yield in maize (Zea mays L.) was conducted using the cultivars UNA-J1 and UNA-B1. The cultivar UNA-J1 has yellow kernels while UNA-B1 has white kernels. Both cultivars are grwon in the Ivory Coast. The plant material was procured on the market in Abidjan. In this study, we sought to understand the genetic diversity and morphological characteristics of these maize cultivars on the basis of nine variables selected among the descriptors of maize. We used a factorial design with two treatments, the plants and the pollen sources, both with two levels. Multivariate analysis of variance indicated significant differences of the effects of pollen sources. In the other hand, the analysis showed significant differences of the effects of plants for the variables, LOEP , NRG and P100G. The cultivar UNA-B1 had a significantly longer cob than the cultivar UNA-J1. Yet UNA-J1 had more grains on the cob and a 100-grain weight heavier than UNA-B1. The correlation analysis showed a highly significant positive correlation between NDF and NRG and between NDF and NFL. The correlation between yield per plant and each of the variables, P100G, NMRG and NRG was positive and highly significant. The correlation between yield per plant and NDF is positive and significant. A principal component analysis showed that the number of kernel rows on a cob had higher variability, followed by the number of kernels per row and the number of leaves per plant. Moreover, the average number of kernels per row, the 100-grain weight and the number of leaves had more influence on UNA-J1. The number of kernel rows on the cob relatively affected more the cultivar UNA B1. A targeted selection for a higher number of kernels per row, elevated 100-grain weight, and increased number of leaves in the cultivar UNA-J1 will actually make a significant improvement of the grain yield for that variety. A selection that would increase the number of kernel rows on the cob in the UNA-B1 variety will significantly improve that variety. And improving these four variables would be more beneficial to the hybrid, a cross between the two varieties. VIII Keywords: corn, genetic diversity, variety. 1 INTRODUCTIONLe maïs (Zea mays L.), est une céréale qui appartient à la famille des Graminées (Poaceae) et à la sous-famille des Panicoideae (Barrière, 2000).Son centre d'origine et de diversité se trouverait en Amérique Centrale plus précisément au Mexique (Fukunaga et al., 2005). Introduite en Europe au XVIe siècle, il est aujourd'hui très cultivé en Amérique latine, en Asie, en Afrique et en Europe. Le maïs est la plante la plus cultivée au monde et la première céréale produite, devant le blé. Il représente 41% de la production mondiale de céréales (blé : 40%, orge : 9%) et couvre (moyenne 2 000 à 2003) 140 millions d'hectares à travers le monde. En 30 ans, la production de maïs a doublé. La production mondiale de maïs pour 2013 serait de 839 million de tonnes, contre 653 millions de tonnes pour le blé (planetoscope statistique, 2013). Le rendement moyen mondial est de 43 quintaux à l'hectare (q/ha). Les céréales constituent la base de l'alimentation humaine avec 36.2% des apports calorifiques et 40% des apports protéiniques, dont 19,5% et 22% pour le maïs (MINADER, 2006). En Côte d'Ivoire, le maïs est cultivé dans diverses zones agroécologiques, seul ou en association avec la plupart des cultures (Akanvou, 1997). Avec une production moyenne annuelle d'environ 600.000 tonnes, le maïs est, en Côte d'Ivoire, la céréale la plus cultivée après le riz. Le maïs constitue l'aliment de base de nombreuses populations ivoiriennes. Il intervient aussi dans l'alimentation animale et dans l'élevage moderne (Volailles, porcs, bovins) (Doffangui, 1997) et sert de matière première dans certaines industries (brasserie, savonnerie et huilerie) (Boone et al., 2008). Les rendements moyens des variétés traditionnelles en milieu paysan sont de l'ordre de 0,8 tonne par hectare ; contre 2 à 5 tonnes par hectare en milieu contrôlé pour les variétés sélectionnées à partir des travaux de recherche. La culture du maïs est un secteur fournisseur de devises pour l'économie ivoirienne. Par son cycle de production court, il permet de maximiser les revenus des paysans et contribue ainsi à garantir la sécurité alimentaire en Côte d'Ivoire. Le maïs cultivé aujourd'hui résulte de cinq siècles d'amélioration par l'homme. Ce processus de sélection a permis d'adapter cette plante aux différents climats et usages, d'accroître sa résistance et d'optimiser sa productivité. Les techniques modernes d'hybridation ont permis d'apporter des améliorations considérables durant le 20ème siècle. Malheureusement, l'expansion de la filière maïs en Côte d'Ivoire rencontre plusieurs difficultés à savoir : des techniques de production rudimentaires, une faible productivité, une faible organisation des acteurs. Ces difficultés entraînent, une évolution de la production qui 2 est largement inférieure à l'accroissement de la population. La récente et rapide introduction des organismes génétiquement modifiés (OGM) a accru l'intérêt des producteurs de maïs mais aussi des scientifiques à mieux comprendre les avantages et les inconvénients liés à la culture des OGM. Depuis la commercialisation en1996 des cultures transgéniques, leur surface a très rapidement augmenté dans le monde pour atteindre 58,7 millions d'hectares en 2002 (James, 2002). Cependant cette technique n'est pas encore entrée en vigueur dans nos lois. En réponse à cette nécessité d'améliorer la production nationale, nous avons entrepris de caractériser un maximum d'écotypes des principaux types de maïs hautement cultivés et consommés en Côte d'Ivoire à savoir maïs jaune et maïs blanc. L'objectif de la présente étude est disposer d'une collection de variété de maïs local pour la mise au point de plusieurs variétés améliorées de maïs qui seront adaptées à nos différents environnements et à haut rendement. De façon spécifique, cette étude vise entre autre à déterminer les caractéristiques morphologiques des variétés de maïs à grain jaune en comparaison avec celles des maïs à grain blanc à parti de leurs effets maternels et de leurs pollens. Ces études permettront d'élucider le statut ainsi que les performances des variétés locales. Toutes ces données peuvent permettre d'envisager la mise au point de variétés hybrides hautement performantes. Le présent document, qui vient rendre compte des travaux effectués, nous donnera après les généralités sur le maïs, la description du site, le matériel et méthodes, la présentation des résultats qui seront discutés, et enfin, la conclusion et les perspectives. PREMIERE PARTIE : 3 REVUE BIBLIOGRAPHIQUE 4 1. GENERALITE SUR LE MAÏS 1.1. Origine et distribution Cette espèce, originaire du Mexique, constituait l'aliment de base des Amérindiens avant l'arrivée en Amérique de Christophe Colomb. La plante fut divinisée dans les anciennes civilisations d'Amérique centrale et méridionale, et était cultivée par les Nord-Amérindiens avec la courge et le haricot en utilisant la technique dite « des trois soeurs ». Introduite en Europe au XVIe siècle, elle est aujourd'hui cultivée mondialement et est devenue la première céréale mondiale devant le riz et le blé.
Figure 1: Un champ de maïs (CNRA, 2006) 1.2 Systématique Règne: Plantae Sous-règne:Tracheobionta Division :Magnoliophyta Classe :Liliopsida Sous-classe :Commelinidae Ordre :Poales Famille :Poaceae Sous-famille :Panicoideae Genre :Zea Espèce : Zea mays L.
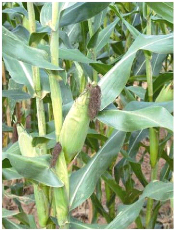
5 Figure2: Un plant de maïs (CNRA, 2006) 1.3 Description botanique de la plante 1.3.1 Système racinaire Elles sont du type fasciculé. Elles sont superficielles car elles ne dépassent pas 50 cm de profondeur. Des racines adventives aériennes se forment sur les noeuds de la base des tiges. 1.3.2 Tige ou stipe A la différence des autres graminées, le maïs ne talle pas en général. Il n'y a donc qu'une tige unique ronde, plus ou moins cannelée, constituée de noeuds et d'entre-noeuds. Les entre-noeuds de la base sont plus courts. La tige est remplie d'une moelle sucrée. Elle mesure de 1,5 à 3,5 m de haut et 5 à 6 cm de diamètre. 1.3.3 Feuilles Elles s'attachent sur la tige au niveau des noeuds. Elles sont formées d'une gaine et d'un limbe Plat. Entre le limbe et la gaine on distingue une petite ligule. Il n'y a pas d'oreillettes. 1.3.4 Inflorescences On trouve une inflorescence mâle et des inflorescences femelles séparées sur un même pied. L'inflorescence mâle est une panicule terminale composée d'épillets contenant chacun 2 fleurs 6 mâles. Les inflorescences femelles sont au nombre de 1 à 4/pied. Elles sont situées à l'aisselle des feuilles du milieu de la tige. Ce sont des épis enveloppés dans des feuilles rudimentaires appelées "Spathes". Chaque épi est constitué par un "rafle" sur lequel sont insérés en rangées verticales des centaines d'épillets à 2 fleurs femelles dont une seule est fertile. Au moment de la fécondation, les styles des fleurs sortent à l'extrémité des épis sous forme de soies vertes ou rosées. 1.3.5 Les fleurs Les fleurs mâles sont composées de glumes et glumelles entourant 3 étamines. Les fleurs femelles possèdent chacune 1 ovaire surmonté d'un style très long. Les fleurs mâles fleurissent avant les fleurs femelles. La fécondation est donc croisée. 1.3.6 Fruits ou graines C'est un caryopse. Chaque grain est disposé en rangées verticales de 8 à 20 (selon les variétés) le long de la rafle de l'épi. Les grains sont très variables avec les variétés quant à leur forme (globulaire, ovoïde, prismatique, etc....), à leur couleur (blanc, jaune roux, doré, violet, noir) à leur taille, à leur espèce (lisse ou ridé). Les bons grains pour le choix des semences sont au milieu de l'épi, les petits aux extrémités. Chaque grain est composé d'une enveloppe, d'un albumen, d'un cotylédon et d'un embryon. On compte 500 à 1000 grains par épi. Un épi pèse 150 g en moyenne.
Figure3: Semences de la variété F 8128, maïs à grain jaune (CNRA, 2006) 7 1.4 Biologie de la reproduction sexuée du mais 1.4.1. Organes reproducteurs Le maïs est une plante monoïque : les fleurs mâles et femelles sont portées par la même plante mais placées à des endroits différents. L'inflorescence femelle (l'épi) se développe latéralement à partir d'un bourgeon axillaire, inséré à la base d'une feuille située au milieu de la plante. L'épi possède 12 à 20 rangées d'ovules surmontées de longs styles, les soies. Il est protégé par 10 à 20 feuilles modifiées, les spathes. L'inflorescence mâle (la panicule) est constituée d'épillet composé de deux fleurs, chaque fleur possédant trois étamines. Ramifiée, elle est située à l'extrémité de la tige. Les deux fleurs d'un même épillet ne libèrent pas le pollen en même temps : une des deux fleurs a une avance de 3 à 4 jours sur l'autre. La floraison des épillets se fait dans un ordre bien précis et commence sur le brin maître de la panicule. La formation du pollen débute 2 à 3 semaines avant la floraison. Pour une seule panicule, la libération totale du pollen dure 8 à 10 jours. (Références) 1.4.2. Phénologie Les graines germent 3 à 5 jours après semis. Les premiers boutons floraux (panicule) apparaissent 50 jours après semis. Les fleurs femelles, appelées soie, apparaissent 2 à 7 jours après les fleurs mâles. Cependant les fleurs femelles, à peine visibles, sont déjà réceptives jusqu'au 15e jour mais le pic de réceptivité est le 6e jour. La progression de sortie des soies se fait ensuite de bas en haut jusqu'à l'extrémité de l'épi. La sortie complète a lieu en 4 à 6 jours. L'épi commence à se développer un mois avant la floraison (stade 7-8 feuilles). La floraison est échelonnée et le maïs est dit protandre. Du fait de la monoecie et du décalage dans le temps de la maturité mâle et femelle, la fécondation croisée est favorisée. La maturation des épis que nous caractérisons par le jaunissement des pédoncules est par conséquent très échelonnée. Néanmoins, tout le couvert végétal se dessèche 35 à 45 jours après le début de la fructification chez le maïs de sorte que la période de production peut être estimée à trois mois. (Références) 1.4.3. Pollinisation La pollinisation est le transport du grain de pollen d'une fleur mâle sur le stigmate d'une fleur femelle (Champagnat et al., 1969 ; Roselinio et al., 2009). Elle constitue le point de départ de la reproduction sexuée dont la phase ultime est la production de la graine (Lafon et al., 1996). Selon Culley et Hardiman (2009), la pollinisation, grâce au brassage de l'information 8 génétique, permet la reproduction sexuée et contribue ainsi à l'accroissement de la capacité d'adaptation des plantes aux conditions du milieu. Le rendement des graines à la récolte est fonction de la quantité de pollen déposée sur les stigmates des fleurs femelles chez la majorité des cucurbitacées (Elmstrom et Mayard, 1990). Il existe deux modes de pollinisation chez les plantes à fleurs : la pollinisation naturelle (pollinisation libre) et la pollinisation artificielle (ou manuelle). En effet, la pollinisation naturelle est assurée par des agents naturels tout autres que l'homme. En fonction de la nature ces agents pollinisateurs, l'on distingue : La pollinisation anémophile ou anémogamie provoquée par le vent ; L'hydrogamie lorsque l'agent pollinisateur est l'eau ; La zoogamie, elle est accomplie par les animaux ; La pollinisation entomophile ou entomogamie : c'est le modèle le plus répandu de la zoogamie. Il est assuré par les insectes auxiliaires. La pollinisation artificielle ou manuelle est réalisée par l'homme. Elle consiste à frotter l'anthère constituée de pollen ou à extraire et à déposer le pollen sur le stigmate de la fleur femelle. Elle se fait dans des conditions contrôlées et nécessite l'utilisation d'un matériel technique pour empêcher tout contact des fleurs d'avec les agents externes. Il existe deux types de pollinisation chez les plantes. Ce sont : La pollinisation directe ou autopollinisation qui se déroule lorsque la fleur s'autopollinise elle-même, c'est-à-dire que le pollen de cette fleur se dépose sur son propre stigmate ou sur le stigmate d'une autre fleur de la même plante (Camefort, 1993). Ce type de pollinisation est caractéristique des plantes autogames qui sont naturellement prédisposées à le pratiquer. La pollinisation croisée ou allofécondation qui consiste à transporter et à déposer le pollen d'une fleur mâle venant d'une plante á sur le stigmate de la fleur femelle d'une plante â. C'est le type de pollinisation le plus fréquent chez les plantes allogames (Bodna., 1991). Il est utilisé pour réaliser l'hybridation entre ou dans les espèces végétales et contribue à augmenter considérablement l'hétérozygotie chez les plantes. 9 1.5. Hybridation 1.5.1. Définition L'hybridation consiste à réaliser un croisement entre deux variétés, deux races d'une même espèce ou entre deux espèces différentes (Maubourguet, 1995 ; Fouquet, 2002). Les individus issus de ce croisement sont appelés hybrides.Ils présentent généralement des caractères issus des parents (Brader, 1988 ; Baudoin et al., 2004). Son objectif est de combiner les meilleurs caractères des différents parents dans leur descendance (Brader, 1988). Lorsque le croisement a lieu entre différentes espèces, on parle d'hybridation interspécifique. Dans le cas du croisement de deux individus issus de la même espèce, il s'agit de l'hybridation intraspécifique. La réalisation nécessite trois étapes essentielles notamment le choix des variétés parentales génétiquement différentes, la recherche de lignée pure et l'allopollinisation entre les deux lignées pures choisies. Pour Wehner et al. (2001), dans le choix des variétés parentales, l'un des parents doit au moins être fécond tandis que l'autre c'est-à-dire le donneur, est porteur des traits à transférer à l'individu receveur. La recherche de lignée pure permet d'élever le taux d'homozygotie des parents par autopollinisation successives (Tanaka et al., 1995). » 1.5.2. Hybridation interspécifique C'est la réalisation du croisement entre deux génotypes distincts issus d'espèces différentes (Maubourguet., 1995). Elle expose beaucoup de difficultés car des obstacles biologiques de diverses natures empêchent le libre-échange de l'information génétique (Baudouin et al., 2004).Le maïs et d'autres espèces et sous-espèces de téosinte sont sexuellement compatibles et peuvent produire des hybrides fertiles (Wilkes, 1977). Les espèces voisines de Zea mays sont limitées sur le plan géographique et ne se trouvent qu'au Mexique et au Guatemala. Le genre le plus proche est Tripsacum, qui comprend onze espèces, largement réparties entre le 42°N et le 24°S de latitude (de Wet et al., 1981). Il existe trois espèces aux États-Unis, dont deux, Tripsacum floridanum et Tripsacum lanceolatum, sont confinées dans les états les plus méridionaux des États-Unis. Seule Tripsacum dactyloides a une aire de répartition incluant la ceinture du maïs du nord des États-Unis (Gould, 1968). 10 1.5.3. Hybridation intraspécifique Cette hybridation consiste au croisement de deux génotypes différents venant de la même espèce. Elle présente des avantages parce que les génotypes parentaux sont autocompatibles et sont liés par affinité génétique, de même les chromosomes parentaux sont homogènes. Toutes fois il peut y avoir incompatibilité pré-zygotique ou post-zygotique (Kouadio et al., 2006). 1.6. Amélioration génétique variétale L'amélioration génétique est le processus par lequel la fréquence des gènes favorables est accumulée dans une population. Elle vise à accroître les valeurs phénotypiques moyennes des populations en exploitant la variabilité intra-variétale (sélection) ou la variabilité inter-variétale (croisement) (Laminou, 1999). Il s'agit d'identifier les individus qui portent ces gènes désirés et de les choisir comme parents de la future génération. 1.7. Hétérosis ou vigueur hybride Le phénomène de l'hétérosis a été exploité intensivement dans la sélection du maïs. Hétérosis ou vigueur hybride et dépression consanguine sont complémentaires et les deux phénomènes sont souvent observés dans les mêmes études. Ces méthodes de sélection du maïs au cours du vingtième siècle ont été développées pour tirer parti de la manifestation de l'hétérosis dans les croisements de consanguinités. Les changements dans les méthodes de sélection ont également entraîné des changements dans la multiplication des semences. Koelreuter (1766), Chevalier (1799), et Gärtner (1849) ont étudié et décrit l'hybridation des plantes, mais apparemment la première interprétation correcte de l'hybridation dans le maïs a été fourni par une lettre écrite par Cotton Mather en 1716. Darwin (1877) a été le premier à mener des expériences comparant les plantes autofécondées et croisées à partir des mêmes stocks de maïs; il a constaté que la hauteur des plants de plantes croisées était plus grande que les plantes autofécondées. Depuis plus d'un siècle, l'hétérosis a engendré de nombreux travaux scientifiques suite aux enjeux agro-économiques énormes. Il se définit comme l'augmentation de la vigueur observée au niveau de la descendance du croisement entre deux individus génétiquement éloignés (Gallais, 2009). Sa mise en évidence n'est pas seulement macroscopique mais peut se voir 11 aussi à tous les niveaux d'organisation du vivant pourvu que les caractères considérés soient polygéniques (de Vienne et Fievet, 2009). 1.7.1. Preuve empirique La manifestation de l'hétérosis dans les croisements de variétés de maïs par Beal (1880) a alerté d'autres chercheurs aux avantages possibles de variétés croisés. La plupart des études portaient sur des croisements d'une série de variétés à pollinisation libre avec une variété à pollinisation libre qui était soit d'un rendement élevé ou populaire auprès des agriculteurs locaux. La méthode d'évaluation et le choix des variétés inscrites pour l'évaluation de l'hétérosis ont également changé. Au lieu de croiser un groupe de variétés à une variété de testeur commun, la conception d'accouplement diallèle a été utilisée pour déterminer la performance générale d'une variété en comparaison avec d'autres variétés et la performance spécifique d'une paire particulière de variétés. Parce que le rendement est le trait économique le plus important du maïs, seules les informations de l'hétérosis sur le rendement sont données. Hayes et Olson (1919) ont déclaré: «l'utilisation de croisements de première génération entre les variétés pures est un moyen d'accroître le rendement du maïs, bien que tous ces croisements ne sont pas aussi productifs, sans valeur". 1.7.2 Concept biométrique Falconer (1960) a montré que l'hétérosis sera exprimée lorsque nous avons les conditions suivantes: (1) la présence de même niveau de dominance et (2) la différence relative en fréquence des gènes des deux parents à cause de l'ampleur de l'hétérosis exprimée en croix. Si l'une ou les deux conditions ne sont pas, l'hétérosis ne sera pas manifeste. Comme montré précédemment, hétérosis est défini comme h = F1-MP, où F1 est la valeur de la première de génération de croisement entre deux populations parentales de lignées en équilibre Hardy-Weinberg et MP est la valeur du meilleur des parents. 1.7.3. Historique Décrit, il y a près de 25 milles ans, et exploité en amélioration des plantes, dès l'aube de la génétique, le phénomène d'hétérosis a toujours suscité la curiosité des sélectionneurs et chercheurs dans le monde entier. Au départ, l'on employait le terme « vigueur hybride » et ce sont les travaux de Koelreuter (1876) sur des plantes (Datura sp., Nicotiana sp.) qui ont révélé la vigueur hybride et il conclut qu'elle était due à la dissimilarité des parents croisés (Gowen, 1952). Par la suite, Darwin (1876) montre que les effets défavorables de la 12 consanguinité sont plus importants chez les plantes allogames que chez les espèces autogames. Les suggestions de Shull (1908) à la suite d'expérimentations sur le maïs seront le début d'importants travaux sur la vigueur hybride et sur l'effet d'inbreeding. Six ans plus tard, Shull (1914) définit la vigueur hybride comme : « l'accroissement de vigueur, de taille, de fertilité, de vitesse de développement, de résistance aux maladies et aux insectes, ou aux adversités climatiques de toutes sortes, manifesté par les organismes issus de croisement par rapport aux individus consanguins dont ils dérivent, et résultant spécifiquement d'une dissemblance dans la constitution des gamètes parentaux qui s'unissent ». La même année, le même chercheur proposa le terme « hétérosis » par contraction à « hétérozygosis » (Gowen, 1952). 1.7.4. Quantification de l'expression de l'hétérosis La définition de Shull (1914) de l'hétérosis n'étant pas suffisamment précise pour quantifier l'expression de l'hétérosis, diverses définitions sont proposées. ? Hétérosis meilleur-parent. Pour un caractère donné, il correspond à la supériorité de l'hybride par rapport au meilleur parent. ? Hétérosis parent-moyen. Il est exprimé en valeur relative par la moyenne des deux parents. Nous avons aussi: ? L'hétérosis économique qui
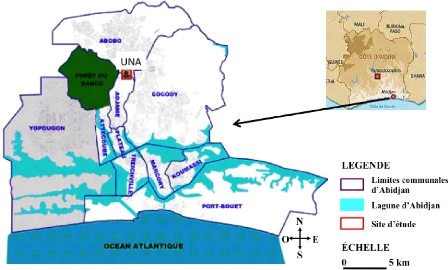
correspond à l'écart en valeur absolue ou en valeur ? L'hétérosis moyen qui se calcule par la différence entre la moyenne des hybrides F1 et la moyenne de tous les parents. Il n'implique pas la supériorité par rapport au meilleur parent et il équivaut à la moyenne des hétérosis du généticien (Gallais, 2009). 1.7.5. Bases génétiques de l'hétérosis Hétérosis, que ce soit des croisements de variétés ou lignées consanguines, on observe dans le maïs, mais la base génétique de l'hétérosis observé est encore conjecturale. Différentes théories ont été proposées comme explication, certains ayant et d'autres de ne pas avoir une base génétique.Shull (1908) a présenté la première théorie de l'hétérosis, désignée comme la stimulation physiologique ou hypothèse de l'hétérozygotie. La théorie était basée sur la prémisse que hétérozygotie lui-même était la cause de l'hétérosis, qui est une explication non- mendélienne. En 1936, l'Est a examiné la preuve pour hétérosis et a conclu que les facteurs de croissance favorables dominants étaient insuffisants pour expliquer hétérosis. Il a proposé que plusieurs allèles d'un locus se différencient en ce qui concerne leurs fonctions physiologiques.Hypothèses de l'hétérosis par Bruce (1910), les principales caractéristiques de l'hypothèse de Bruce était que l'hétérosis se produirait si les parents diffèrent dans la fréquence des gènes et de la domination était présent; ce fut une hypothèse génétique mendélienne. Jones (1917, 1945, 1958), entre autres, était un fervent partisan de l'hypothèse que l'hétérosis se manifeste par l'accumulation de facteurs favorables dominants à des loci différents. Les partisans de l'hypothèse de superdominance ont attaqué l'hypothèse de la position dominante parce que la preuve n'a pas étayé le modèle proposé. L'effet hétérosis est engendré par trois phénomènes au niveau génétique :La dominance complète, elle se définit comme l'interaction entre les gènes allèles. L'hétérosis résulte de l'association chez l'hybride des allèles dominants, favorables, des différents locus présents des deux parents (Gallais, 2009). L'épistasie : c'est l'interaction entre gènes non allèles. Elle n'implique qu'une substitution allélique en un locus modifie les effets d'une substitution en un autre locus. Cet effet génétique peut engendrer la vigueur hybride (de Vienne et Fievet, 2009). La superdominance qui se définit comme la supériorité de l'hétérozygote à un locus par rapport au meilleur homozygote (Crow, 1948). 1.7.6. Importance de l'hétérosis dans la sélection des variétés hybrides L'hétérosis est un phénomène très utilisé en amélioration des plantes et la création des variétés hybrides en est son corollaire. Les variétés hybrides résultent du croisement contrôlé de deux parents génotypiquement éloignés. En effet, l'analyse de la vigueur hybride permet la sélection de variétés très performantes. Aussi, l'hétérosis met en évidence les différents gènes dominants favorables apportés par les parents. Le phénomène d'hétérosis chez les plantes est fonction du système de reproduction. Par ailleurs, cette vigueur hybride est plus élevée chez les plantes allogames et pour les caractères polygéniques. Au niveau des caractères simples, l'effet hétérosis dépend du croisement (Gallais, 2009). 13 1.8. Facteurs écologiques 1.8.1 Climat La culture du maïs concerne près de 150 pays dans les cinq continents, du 50e degré de latitude nord au 50e degré de latitude sud et du niveau de la mer à plus de 3 000 mètres d'altitude. Le maïs est une culture d'été. Il nécessite pour une germination active une température minimum de 10 °C et au moins 18 °C pour sa floraison.On estime qu'il faut en moyenne mensuelle de 100mm d'eau durant toute la période de savégétation, le maïs étant une plante exigeante en eau, surtout en phase de : germination,croissance, floraison, fécondation et grossissement des grains. Mais la période la plus critiquepour l'eau s'étend sur les 15 jours qui précèdent et les 15 jours qui suivent l'apparition desinflorescences mâles. Le maïs demande une forte insolation. Le maïs pousse aussi bien en bordure de la mer que sur les Hauts-Plateaux lorsque lesconditions écologiques précédentes sont satisfaisantes. Néanmoins, il ne peut pas dépasser1800m d'altitude. 1.8.2 Sol Le maïs préfère des sols richesmais peut tout de même pousser en sol sablonneux s'il est irrigué et fertilisé. Les meilleurs sols sont : Profonds, meubles, frais, assez légers, fertiles, humifères pour éviter les risques detassement et d'engagement permanent en eau asphyxiant les racines. Surtout sols alluvionnaires de baiboho ou issus d'un volcanisme récent qui contiennent deséléments minéraux et de la matière organiquesols de pente < 12% pour éviter les risques d'érosion des sols pas trop acides, pH< 5.C'est une culture améliorante grâce à son enracinement profond et ses importants apports de matière organique (huit à dix tonnes par hectare) assurés par les résidus de culture. 1.9. Utilisation et importance 1.9.1. Importance socio-économique Le maïs fait l'objet par ailleurs de nombreux usages. 1 500 utilisations du maïs ont été répertoriées. Le maïs a actuellement trois grands type d'utilisations : l'alimentation animale qui est de loin le premier débouché (environ les deux tiers globalement), l'alimentation humaine, et enfin les industries agroalimentaires et agroindustrielles. 14 ? Alimentation animale, 15 Le maïs est une matière première particulièrement appréciée pour nourrir les animaux. 70% de la consommation mondiale (600 à 640 millions de T) concernent la consommation animale (420 à 440 millions de T). La plante entière peut être consommée par le bétail comme fourrage frais ou sec ou comme ensilage. Le maïs est une plante d'élevage d'embouche, elle permet donc d'engraisser plus rapidement les bovins et augmente ainsi la production de lait des vaches. ? Industrie Il entre dans la composition de plus de 400 produits principalement issus des amidonneries, semouleries ou distilleries. 1/4 des produits non alimentaires vendus en supermarché contiennent du maïs. Le maïs est utilisé comme matière première en agro-industrie et agro-alimentaire. En industrie agroalimentaire (biscuiterie, pâtisserie, brasserie, distillerie, etc.), l'amidon sert :à la préparation des bouillies pour les enfants, biscuits, bière (gin, whisky), malt, colles, textiles, apprêts pour tissu,papiers, cartons, peintures, détergents, matériaux de construction. Aux germes de maïs donnent de l'huile qui sert pour l'alimentation humaine, pour lafabrication de margarine, de savons, de vernis, de textiles artificiels, antibiotiques, crèmes de beauté, dentifrices. Aux tiges et spaths servent à la fabrication des fumiers de fermes La demande de maïs croit constamment dans le monde.Les industries de la rafle (axe ligneux et renflé de l'épi) du maïs fournissent compost, combustible, abrasif, litière. Le maïs est un purificateur de l'air encore plus efficace que la forêt, traditionnel « poumon vert ». En effet, il produit beaucoup d'oxygène, absorbe beaucoup de gaz carbonique et « piège » dans le sol le carbone du gaz carbonique, l'empêchant de polluer l'atmosphère et de renforcer l'effet de serre. Par ailleurs, l'éthanol, dérivé du maïs, carburant renouvelable à la différence du pétrole, donne naissance à un carburant « propre », beaucoup moins polluant que l'essence traditionnelle constituant un véritable atout pour l'environnement.Une utilisation insolite du maïs est la création de labyrinthes comme attractions touristiques estivales. 1.9.2. Importance nutritionnelle Consommation mondiale (1999) : 593 millions de tonnes Le maïs est cultivé pour ses grains, riches en amidon (environ 63 %), qui constituent la base de l'alimentation de nombreuses populations. Historiquement, le maïs a été l'aliment de base de toutes les civilisations précolombiennes. Il s'est répandu dans d'autres contrées, en Europe et en Afrique, se substituant partiellement ou totalement à des céréales consommées plus largement autrefois comme le mil et le millet.Il est consommé soit sous forme de graines entières (séparées ou sur épi), soit réduit en farine et préparé sous forme de bouillies ou de galettes cuites.La 16 composition et la valeur nutritionnelle varie de façon très significative d'une variété à l'autre. Ainsi selon le département américain de l'agriculture la teneur en calorie varie de 86 kilocalories pour 100 g pour le maïs doux jaune sauvage (« corn, sweet, yellow, raw »)à 386 kcal pour le maïs dur jaune en grains (« corn grain »). En Afrique, le maïs est consommé grillé sur un feu de bois ou de charbon (Kanoun), et aussi sous forme de bouillies ou de couscous, par exemple en Casamance. En Amérique centrale, et particulièrement au Mexique, la farine de maïs sert à fabriquer des galettes traditionnelles appelées tortillas, Dans les pays andins, les Amérindiens préparent à partir du maïs une boisson fermentée traditionnelle, la chicha. Les données indiquées par la FAO pour le maïs à destination de l'alimentation humaine sont les suivantes :Glucides : 72 à 73 % de sucre lent (amidon) plus 1 à 3 % de sucre rapide (glucose, saccharose et fructose) soit 18,8 g de glucides pour 100 g de maïs, Protéines : 8 à 11 % soit 2,9 g sur 100 g de maïs, Lipides : 3 à 18 % (dont 13 % d'acides gras saturés) soit 1,3 g de lipides pour 100 g de maïs, des fibres alimentaires, Et un ensemble de Minéraux: P, K, Ca, Mg, Na, Fe , Cu, Mn, Zn, les Vitamines : A et E. Sa Valeur nutritionnelle est de 99 kcal (ou 414 kJ) pour 100 g et l'Indice glycémique est 65 1.9.3. Importance médicale Les styles de l'inflorescence femelle, filaments très allongés portant les stigmates, appelés « cheveux de maïs » ou « barbes de maïs » ou « soies », sont inscrits dans la pharmacopée traditionnelle, notamment en France, pour leur propriétés cholagogues, diurétiques et antilithiasiques. On les emploie sous forme de décoction ou d'extrait liquide. Leur teneur en vitamine K leur donne aussi des vertus antihémorragiques. Ils contiennent en outre de la mannite, des matières grasses et des sels minéraux. 1.10. Ennemis du maïs 1.10.1 Ravageurs Les ravageurs essentiellement les animaux etinsectesqui sont les plus dangereux. Ces animaux sont Corbeaux : mangent les grains sur les épis mêmes, Pigeons : détruisent les semis en mangeant les grains semés, Rats : Consomment les grains sur pied, Sangliers / Boeufs : Consomment les pieds de maïs à l'état vert.Les insectes ravageurs du maïs sont le coléoptère 17 Hétéronychus, Chenille, Cigales, Borers, Pucerons, Charançons.Ainsi, un hectare de maïs en végétation renferme en moyenne entre 300 000 et 400 000 insectes. De la végétation, aux stades semis et jeunes plantules, la fonte des semis, due à divers champignons, nécessite une désinfection des semences. Les plantules par des insectes ou leurs larves : courtilières, taupins, vers gris (noctuelles), etc. Un nouveau ravageur, la chrysomèle, jusqu'alors cantonnée au continent américain où venant d'Amérique centrale, elle avait envahi la Corn Belt américaine dans les années 1970 et y est devenue le principal ravageur des cultures de maïs. En cours de végétation (des premières feuilles au début de la floraison), des phénomènes de flétrissement ou dépérissement des plantes peuvent être causés par des vers gris (noctuelles) des chenilles de sésamie, des vers blancs (hannetons), etc. Des feuilles perforées sont la marque de la pyrale, un des ravageurs les plus dangereux, la verse peut provenir d'attaques de Nématodes des tiges et des bulbes. Après la récolte, enfin, les grains stockés peuvent être attaqués par diverses espèces d'insectes : charançons des grains, alucites des céréales, teignes des grains, teigne bicolore, etc. Mais divers moyens de lutte sont disponibles(Souci, 2008). 1.10.2 Maladies En fin de végétation, se manifestent diverses maladies des tiges et des feuilles dues à la rouille du maïs, due à un champignon Puccinia maydis qui s'attaque aux feuilles, à l'anthracnose du maïs(Colletotrichumgraminicola), à l'helminthosporiose(Helminthosporium turcicum), à la fusariose de la tige (Fusariumspp.), etc. Les chenilles de la pyrale du maïs (Ostrinianubilalis) attaquent les feuilles et les tiges, provoquant souvent la cassure de ces dernières.Des tumeurs apparaissant sur les épis sont la marque du charbon du maïs dû à un champignon Ustilagomaydis qui s'attaque aux épis et tiges provoquant la formation deboursouflures grisâtres remplies de poussières noires.La Mosaïque due à un virus qui s'attaque aux feuilles. Des noctuelles peuvent aussi dévorer spathes et grains vers le sommet des épis. Pour les maladies, la méthode de lutte la plus efficace est souvent de sélectionner des variétés résistantes(Souci, 2008). 18 1.11 Site d'étude 1.11.1 Situation géographique La présente étude s'est déroulée de mai à aout 2016 sur la ferme expérimentale de l'Université Nangui Abrogoua.Cette université est située dans la ville d'abidjan au sud de la cote d'ivoire. Elle se situe à l'intersection des communes d'Abobo et d'Adjamé. Située à proximité de l'usine Filtisac, elle est limitée vers l'ouest par la foret du banco et à l'est par le zoo d'Abidjan. (figure 4) 1.11.2 Sol et végétation Cette zone méridionale est le domaine de la forêt dense. Le site des essais est caractérisé par un sol profond et sableux à sablo-argileux. Le district d'Abidjan est situé dans un bassin sédimentaire. Au Nord, on y rencontre des hautsplateaux sablo-argileux du continental terminal, tandis qu'au Sud, se trouve unensemble de bas plateaux sablo-argileux.Sur le plan géologique et du point de vue de la lithologie, le district d'Abidjanest constituée, de haut en bas, de sables argileux, de sables moyens et de sablesgrossiers(Yao-kouamé& Allou, 2008).Les sols du district d'Abidjan sont constitués de sols ferralitiques (ferralsols) et de solshydromorphes (fluvisols) dans des zones marécageuses (Yao-kouamé & Allou, 2008). LepH du sol est plus acide en surface qu'en profondeur, et la teneur en matièreorganique varie de 2 à 3 %. Ces sols doivent leur hydromorphie aux fortesprécipitations. La ville d'Abidjan est caractérisée par trois types de végétation dans la région d'Abidjan(Monnier, 1983). Une forêt ombrophile sur sable tertiaire (Forêts du Banco et de l'Anguédougou), des formations hydromorphes (forêts marécageuses et mangroves) et les savanes de basses côtes(Avit et al., 1999). En dehors, de ces végétations, on y trouve des végétations aménagées dans la ville d'Abidjan.Ces dernières sont constituées par de vastes espaces où l'on a entrepris descultures vivrières intra-urbaines, des cultures fruitières, maraîchères ethorticoles. La végétation de notre site d'étude à l'Université NanguiAbrogoua est la continuité du parc national du Banco. Aujourd'hui, elle a été profondément modifiée et l'on y rencontre des jachères (Kouonon et al., 2009). 19 1.3. Climat Le climat est de type tropical humide. C'est un climat chaud et particulièrement humide. En effet, Abidjan est située entre 5°17' et 5°31' de l'altitude nord et entre 3°45' et 4°31 de la longitude ouest. Abidjan comme tout le Sud de la Côte d'Ivoire est arrosée d'environ 2000 mm de pluie par an. De plus, les saisons sèches sont douces car elles sont tempérées par la brise de mer (Avit et al.,1999).La température varie peu tout au long de l'année (27° à 37°C en moyenne) avec des taux d'humidité oscillants entre 60 à 90% (Anonyme, 1998).
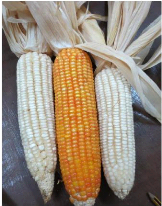
Figure4: Carte administrative du district d'Abidjan (Côte d'Ivoire) situant le site des expérimentations (Source: www.abidjan.net) DEUXIÈME PARTIE : 20 MATERIELS ET METHODES 21 1. MATERIELS 1.1. Matériel végétal Le matériel végétal utilisé dans cette étude est composé de deux variétés de mais (Zea Mays L.). Elles ont été achetées sur le marché avec différentes commerçantes à Abidjan et ont été choisies premièrement à cause de la couleur de l'endosperme des grains. Les variétés avec des grains de couleur jaune sont nommées « maïs jaune » et les autres variétés de couleur blanche sont nommées «maïs blanc».Ces différents lots de graines achetées, ont été regroupés en deux groupes en fonction de leurs couleurs et constituant nos deux variétés. (figure 5)
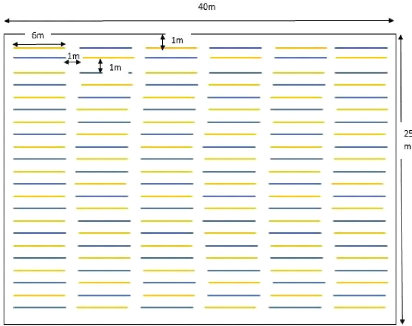
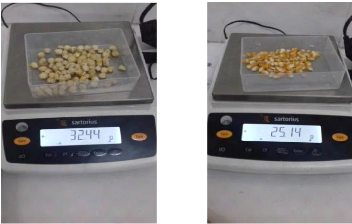
Figure5:Maïs blanc et maïs jaune 1.2. Matériels techniques Le matériel technique est composé de mètre ruban pour la délimitation des parcelles, la machette pour le défrichement, la daba pour le labour et le sarclage, un système d'arrosage, d'un appareil photo. Au moment de la floraison, des toiles isolantes et des étiquettes ont été utilisées. A la récolte des épis, des récipients ont été utilisés pour la collecte, l'égrainage, et la conservation. Les manipulations post-récoltes ont nécessité l'utilisation de pied à coulisse et de balance de précision Sartorius pour les pesées, un cahier bloc-notes, des stylos à bille, des crayons, des gommes, de sachets plastique en polystyrène pour la pollinisation, gants, un système d'arrosage, des sacs, des marqueurs indélébiles. 2. METHODES 2.1. Préparation de la parcelle La préparation du terrain a consisté en un défrichement manuel. Après le défrichement, des piquetages ont été effectués pour marquer les points de semis. De la fumure organique a été apportée suivi d'un labour manuel pour précéder le semis 2.2. Dispositif expérimental Les grains de maïs ont été plantés dans un champ de 40m sur 25m suivant une disposition aléatoire complète avec six répétitions. (Figure6).
22 Figure6: Dispositif expérimental en bloc aléatoire complet avec six répétitions 23 Chaque bloc est sur un espace de 6m sur 25m. Un total de 22 lignes aléatoires ont été plantées dans chaque bloc, avec alternance de chaque variété faisant 11 lignes chacun. Chaque ligne est longue de 6m, et les plantes de la même variété sont plantées dans chaque ligne. Les espaces entre les plantes sont de 0,75m soit 9 plantes par ligne. Les espaces entre les lignes sont de 1m et les six blocs sont aussi séparés de 1m. Une bordure de 1m de largeur a été aménagée autour de l'ensemble des blocs. 2.2.1 Semis de graines(Traitements) Les expérimentations ont été réalisées du mois de mai au mois d'aout 2016 et les semis ont été effectués le 19 mai 2016. Cette période de semis a été choisie par référence au calendrier cultural de la plante et surtout pour que les plantes profitent de la grande saison (de juin à aout). Trois ou quatre graines ont été semées par poquet à 5 cm de profondeur pour garantir un taux de germination maximal dans tous les poquets avec un espacement de 0,75 m sur 1 m pour permettre l'épanouissement des plants. Après la germination, les plantes ont été démariées de sorte qu'il n'en reste qu'une seule (la plus vigoureuse) par poquet. Aussi l'insecticide cypercalEC 50 a été appliqué à l'aide d'un pulvérisateurà pression entretenue de capacité douze litres un mois après le semis. Ces traitements ont été réalisés le matin (10 heures)en l'absence de pluie, de forte température et de vent violent. Les bouilles d'insecticides ont été préparées selon la dose indiquée par le fabriquant c'est-à-dire 0,8 l/ha et 40 ml/15l d'eau. De l`urée (46%) a été apportée en deux fractions : la première durant le démariage et la seconde à la montaison (45 jours après semis) selon la dose de 100 kg/ha. Un arrosage manuel a aussi été effectué chaque matin durant les mois de juillet et aout à cause du manque de pluie inhabituel qui s'est produit. 2.2.2 Conduite des essais Le désherbage régulier a été effectué chaque deux semainesà la daba pour éviter la compétition avec les adventices. Les parcelles ont été également pulvérisées avec le cypercalEC 50 (un insecticide à base de cypermethrine) pour empêcher les attaques des insectes sur les plantes. Un amendement des parcelles avant et après semis a été effectué. De la fumure organique a été apportée suivi d'un labour manuel pour précéder le semis puis de l'urée a aussi été épandu autour des pieds des plants un mois après le semis. Après la floraison, des pollinisations artificielles ont été réalisées. La récolte des épis a été réalisée 24 quand la couleur initiale desspathes qui est verte est devenue jaune. Cette récolte a lieu environ trois mois après le semis. Pour chaque variété, trenteépis ont été récoltés aléatoirement parmi les plantes à pollinisation libres, mais tous les épisà pollinisation assistée ont été récoltés sur la parcelle.
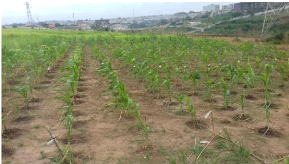
Figure7: Dispositif au champ 2.2.3 Pollinisation manuelle des organes floraux Les épis aléatoirement choisis sont couverts avec des sachets en papier pour empêcher la fécondation par des pollens non désirés. Le jour de la pollinisation, vingt lignes de la population maïs jaune et de la population maïs blanc ont été auto-pollinisées. L'autofécondation est la fécondation d'un ovule par du pollen issu de la même plante. Vingt lignes de la population maïs jaune et de la population maïs blanc ont été croiséesavec des populations de la même couleur et bien identifiées, enfin vingt lignes de la population maïs jaune ont été croisées avec les pollens maïs blanc et vingt lignes de la population maïs blanc ont été croisées avec les pollens maïs jaune. La pollinisation manuelle des fleurs de Zeamays a lieu pendant la période de floraison. En général, elle débute 50 à 95 jours après le semis, quand lapanicule (inflorescence mâle) apparaît au sommet du plant de maïs. La première étape de sa réalisation consiste à faire à la veille de la floraison, l'ensachage des soies (fleurs femelles) dès leurs jours d'apparition car déjà prêtes pour la fécondationetdes panicules (fleurs mâles). La pollinisation a lieu très tôt le matin (entre 6 heures et 10 heures) pendant la période de 5 à 8 jours: ? Il faut retirer les toiles ayant permis l'ensachage des fleurs, ? Il faut prélever des pollens à l'aide des sachets qui ont servi à couvrir les panicules, ? Il faut renverser les grains de pollen sur les stigmates des soies, 25 ? Après la pollinisation, il faut refermer les soies pour le garder intact contre les agents externes, ? Il faut retirer les sachets après une semaine et laisser l'épi poursuivre son développement.
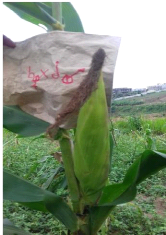
Figure8: Epi issu du croisement maïs blanc et maïs jaune 2.3. Collecte des données Après l'apparition de la soie de l'épi, les mesures suivantes ont été prises sur les lignes aléatoirement sélectionnées des populations de maïs jaune et maïs blanc sur un effectif de 30 plantes par accession.Ce sont 9descripteurs agromorphologiques dont 3 caractères végétatifs: LNF: Longueur de la feuille soutenant l'épi à la fin du développement végétatif, LGF: Largeur de la feuille soutenant l'épi à la fin du développement végétatif, NFE: Nombre de feuilles et 5 caractères de rendements: LOEP: longueur de l'épi, DE: diamètre de l'épi, NRG: nombre de rangées de grains, NMGR: nombre moyen de grains par rangée, P100G: poids de 100 graines. La variable, rendement par plante (REND). Les sources de pollen sont les variables explicatives.Inconnu pour les pollinisations libres, UNA-B1 et UNA-J1 pour les pollinisations contrôlées. L'analyse s'est faite sur la moyenne des effets sur chaque paramètre. 26
2.4. Analyses statistiques Le plan de l'expérimentation utilise un dispositif factoriel avec deux traitements. Les variétés UNA-B1 et UNA-J1 plantées en lignes alternées constituent un premier facteur, et les sources de pollen constituent le deuxième facteur. Dans les pollinisations contrôlées, les plantes aléatoirement choisies comme femelles ont eu leur inflorescence mâle excisée et les inflorescences femelles sont protégées jusqu'au jour de la pollinisation avec des sachets en papiers de dimensions 30 cm x 18 cm. Le modèle linéaire est le suivant : e où 27 ~ est l'erreur indépendamment et identiquement distribuée, est la moyenne générale de la population à travers tous les traitements, est l'effet principal du facteur plante (femelle), contraint à , est l'effet principal du facteur source de pollen (male) contraint à , est l'interaction entre plante (femelle) et source de pollen (male), et contrainte à pour chaque source de pollen k et, pour chaque plante j. Pour prendre en compte l'association physiologique entre les paramètres mesurés, nous avons conduit une analyse de variance multi-variée (MANOVA) où les paramètres, longueur de l'épi (LOEP), diamètre de l'épi (DE), nombre de rangées de grains (NRG), nombre moyen de grains par rangée (NMRG), Nombre de feuille (NDF) à la fin du développement végétatif, largeur (LGF) et longueur (LNF) de la feuille soutenant l'épie à la fin du développement végétatif, et poids de 100 grammes (P100G) sont les variables dépendantes et les facteurs plantes et sources de pollen sont les variables exogènes. La variable, rendement par plante (REND), a été déterminée par la formule suivante: REND = (NRG*NMRG*P100G) /100 Pour les variables dépendantes dont des différences significatives ont été observées avec l'analyse MANOVA, nous avons conduit une analyse de variance uni-variée (ANOVA) et le test de différence significative entre les moyennes de Tukey pour plus de compréhension. Une analyse de corrélation entre ces paramètres mesurés permet une identification des paramètres biologiques mesurés qui sont directement liés à la productivité du maïs. Cette analyse de corrélation est suivie de l'analyse en composantes principales dont la conclusion nous indiquera la meilleure procédure de sélection pour un gain génétique effectif. L'analyse statistique a été conduite avec le logiciel R (2016). TROISIÈME PARTIE : 28 RESULTATS ET DISCUSSION 29 1. RESULTATS ET DISCUSSION L'analyse de variance multi-variée (MANOVA) montre qu'il n'y a pas d'interaction significative entre les plantes et les sources de pollen. Cependant il existe une différence significative des effetsde ces facteurs sur certaines variables. Les analyses démontrent des différences significatives des effets des plantes sur les variables comme longueur de l'épi, le nombre moyen de grains par rangée et le poids de 100 grains. La variété UNA-B1 a un épi significativement plus longue que la variété UNA-J1. Pourtant la variété UNA-J1 a plus de grains par rangée sur l'épie et un poids de 100 grains plus élevés que la variété UNA-B1 (Table 1a). Cette observation nous amène à conclure que la différence de longueur d'épi entre les deux variétés n'a pas une influence significative sur le rendement. Cette conclusion est aussi supportée par le manque de corrélation positive et significative entre la longueur de l'épi et le rendement (Table 2). Table 1a: Effets de la plante sur les moyennes des paramètres influençant le rendement chez deux variétés de maïs.
HSD: Différence significative de la méthode de Tukey; lorsque la différence entre deux moyennes est supérieure au critère HSD alors les deux moyennes sont significativement différentes. CV: Coefficient de variation; il permet d'évaluer la dispersion entre les lignes. Si les lignes ont une dispersion très large c'est que les données ne sont pas fiables. L'analyse de variance multi-variée indique aussi des différences significatives des effets des sources de pollen. Notons que la source de pollen libellée Inconnu est le fait de pollinisation incontrôlée, associée au vent et aux insectes. La longueur de l'épi a été significativement affectée par la source de pollen. La pollinisation contrôlée avec le pollen de la variété UNA-B1 ou la variété UNA-J1 augmente la longueur de l'épi significativement plus que la pollinisation incontrôlée avec la source de pollen libellée Inconnu (Table 1b). 30 Table 1b: Effets du pollen sur les moyennes des paramètres influençant le rendement chez deux variétés de maïs.
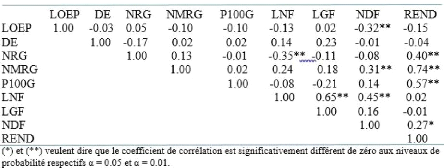
cm cm 1.30 5.78 3.59 DE NRG LOEP Pollen P100G NMRG HSD 1.89 2.78 Variables Dépendantes g Inconnu16.85b4.80 12.62 23.58 20.43b UNA-B1 18.57a4.37 13.14 21.86 21.38b UNA-J1 18.60a4.58 11.81 21.73 26.68a CV 14.23 77.42 13.49 32.82 21.68 HSD: Différence significative de la méthode de Tukey; lorsque la différence entre deux moyennes est supérieure au critère HSD alors les deux moyennes sont significativement différentes. CV: Coefficient de variation; il permet d'évaluer la dispersion entre les lignes. Si les lignes ont une dispersion très large c'est que les données ne sont pas fiables. Aussi, les différentes sources de pollen affectent le poids de 100 grains. Dans ce cas, les pollens récoltés de la variété UNA-J1 pour fertiliser les ovaires augmente significativement le poids de 100 grains que le pollen de la variété UNA-B1 ou le pollen de source inconnu. Cet effet paternel a été aussi observé dans d'autres travaux. Seka et Cross (1995) ont rapporté l'effet paternel sur le rendement en grains du maïs dans une étude avec des variétés améliorées. Malgré le fait que nous ayons utilisé des variétés indigènes de pedigree inconnu dans notre étude courante, nous observons un effet paternel similaire. L'analyse de corrélation donne une corrélation négative très significative (á = 0.01) entre nombre de rangées de grains et longueur de la feuille et entre nombre de feuilles et longueur de l'épi. Tous les autres coefficients de corrélation significativement différents de zéro sont positifs. Nous observons une corrélation positive et très significative entre nombre de feuilles et nombre moyen de rangées de grains et entre nombre de feuilles et longueur de la feuille. La première s'explique par le fait que l'augmentation du nombre de feuilles sur la plante augmente les activités photosynthétiques et la synthèse de carbohydrates. En période reproductive, toute la synthèse est mobiliséeà la formation et au développement des grains, favorisant ainsi un nombre élevé de rangées de grains. La corrélation significative entre le nombre de feuilles et longueur de la feuille explique l'ajustement naturel d'un nombre élevé de feuilles conduisant à des feuilles plus étroites et plus longues et vice-versa. Par ailleurs la corrélation significative observée entre longueur de la feuille et largeur de la feuille vient contre cet ajustement naturel et ne donne aucune explication scientifique soutenable. 31 Table 2: Coefficients de corrélation entre les paramètres mesurés sur les plantes et le rendement par plante.
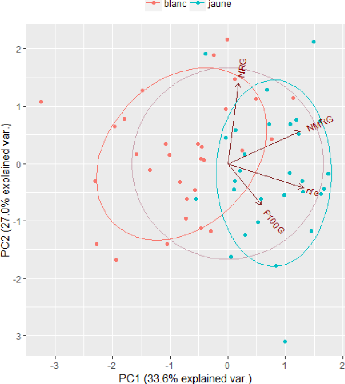
La corrélation entre rendement en grains et, respectivement, les variables poids de 100 grains, nombre moyen de grains par rangée, et nombre de rangées de grains par épi est positive et très significative. La corrélation entre rendement en grains et nombre de feuilles est positive et significative. Les trois premières corrélations avec le rendement en grains sont certainement le fait que le rendement en grains est une combinaison linéaire du nombre moyen de grains par rangée, du nombre de rangées de grains par épi et du poids de 100 grains. La corrélation entre le nombre de feuilles et le rendement en grains explique le fait que durant la phase reproductive toute la photosynthèse est dirigée dans le développement des grains et un nombre élevé de feuilles à cette phase augmente le rendement. Comme le rendement en grains est directement associé au nombre de feuilles, au poids de 100 grains, au nombre moyen de grains par rangée et au nombre de rangées de grains par épi, nous avons conduit une analyse en composantes principales (Figure 11) pour évaluer lesquelles de ces variables offrent plus de variabilités et pour augmenter les possibilités de gain génétique par une sélection effective des lignées ou individus présentant les caractères désirables.
32 Figure11:Analyse en composantes principales des variables poids de 100 grains, nombre de feuilles par plante, nombre moyen de grains par rangée et nombre de rangées de grain par épi. Ainsi, le nombre de rangées par épi offre plus de variabilité suivi du nombre moyen de grains par rangées et du nombre de feuilles par plante. Par ailleurs, le nombre moyen de grains par rangée, le poids de 100 grains et le nombre de feuilles ont plus d'influence sur la variété UNA-J1 (ou maïs jaune) et la variable nombre de rangées de grains a plus d'influence sur la variété UNA-B1 (ou maïs blanc). Une sélection ciblée sur un nombre plus élevé de grains par rangée, une élévation du poids de 100 grains, et une augmentation du nombre de feuilles chez la variété UNA-J1 va effectivement apporter une amélioration significative du rendement en grains de cette variété. Une sélection qui augmenterait le nombre de rangées de grains chez la variété UNA-B1 va significativement contribuer à améliorer cette variété. Et l'amélioration de ces quatre variables serait plus bénéfique à l'hybride issu du croisement entre ces deux variétés. 33 |
| |||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||